Environmental human fungal pathogen: the killers beside you
BAI Xiang-Zheng1, 2, WANG Lin-Qi1, *,
1 State Key Laboratory of Mycology, Institute of Microbiology, Chinese Academy of Sciences, Beijing 100101, China2 University of Chinese Academy of Sciences, Beijing 100049, China
作者简介:王琳淇,中国科学院微生物研究所真菌学国家重点实验室研究员,中国科学院大学岗位教授,国家“青年千人”,国家优秀青年基金获得者。现任中组部“青年千人”生物与医学组副组长,中国微生物学会普通微生物青年委员会主任,菌物学会菌物遗传及分子生物学专业委员会副主任及Faculty of 1000机构副编辑(associate faculty member)。近年来的工作主要以系统生物学手段结合实验动物模型研究人类病原真菌致病和有性生殖(毒力进化)分子调控网络。
Invasive pathogenic fungi can cause life-threatening infections with generally high mortality rate. Notably, most of these fatal fungi are environmental fungal pathogens (EFGs), which normally thrive in certain environmental niches, and invading host is not necessary for their proliferation. It is increasingly appreciated that infections by EFGs are likely linked with their exceptional abilities to adapt to fluctuating stress from their natural niches. Moreover, EFGs can employ meiotic recombination-dependent/-independent strategies to promote microevolution, which underlie production of hyper-virulent and drug-resistant variants in nature. In this review, we focus on Cryptococcus neoformans (a model organism of EFGs), summarize the sophisticated environmental adaptation strategies facilitating its infections, and discuss the determinants engaged in the evolution of Cryptococcus virulence.
Keywords:Cryptococcus neoformans
;
virulence factors
;
morphotype transition
;
quorum sensing
;
sexual reproduction
;
microevolution
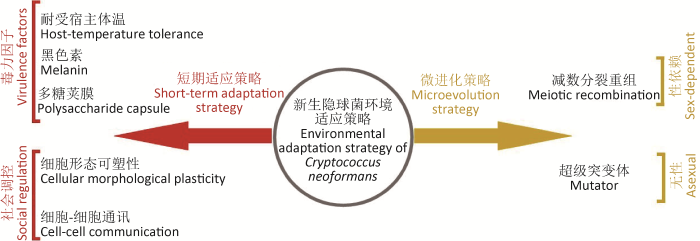
Fig. 1 Cryptococcus neoformans employs sophisticated adaptation strategies to cope with a variety of stress from its host or environmental niches.
隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012)。越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress)。例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要。而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012)。作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996)。黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017)。如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008)。
要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境。在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006)。新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白。Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988)。对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002)。新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势。铁作为必需元素,参与多样的生物学过程。对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013)。酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用。在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017)。这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化。致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017)。隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013)。这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源。
3 隐球菌细胞形态的多样性和细胞-细胞通讯
作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态。细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009)。隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016)。当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology)。为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018)。研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001)。后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013)。由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养。但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍。最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成。该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018)。有性孢子是隐球菌有性生殖的产物。由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体。根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009)。与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015)。Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力。与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染。尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012)。同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013)。以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张。事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关。这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略。
微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014)。其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules)。该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014)。微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006)。随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001)。在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001)。法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012)。而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012)。在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007)。有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016)。本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要。高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018)。关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究。
4 隐球菌的有性生殖和微进化
新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002)。两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014)。然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007)。由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式。隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似。异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期。相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011)。由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略。Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005)。此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生。除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程。Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药。Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation)。这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存。这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战。
Titan cells formation in Cryptococcus neoformans is finely tuned by environmental conditions and modulated by positive and negative genetic regulators.
Pseudohyphal growth of Cryptococcus neoformans is a reversible dimorphic transition in response to ammonium that requires Amt1 and Amt2 ammonium permeases.
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
... ).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Iron acquisition in fungal pathogens of humans
2
2017
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
... ).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
How bacteria talk to each other: regulation of gene expression by quorum sensing
1
1999
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Bacterially speaking
1
2006
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Natural mismatch repair mutations mediate phenotypic diversity and drug resistance in Cryptococcus deuterogattii.
1
2017
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Isolation and characterization of Cryptococcus neoformans spores reveal a critical role for capsule biosynthesis genes in spore biogenesis.
1
2009
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Mismatch repair of DNA replication errors contributes to microevolution in the pathogenic fungus Cryptococcus neoformans.
1
2017
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Hidden killers: human fungal infections
1
2012
... 侵袭性病原真菌感染往往具有较高的致死率,且治疗药物极为有限,严重威胁了人类公共健康安全(Brown et al. 2012).近年来,随着艾滋病在内的免疫缺陷疾病在全球的大范围传播以及免疫抑制疗法的大量应用,免疫缺陷、受损和抑制人群数量急剧上升,导致了侵袭性病原真菌的感染逐年上升.值得注意的是,绝大多数侵袭性病原真菌属于人类环境病原真菌(environmental fungal pathogen),该类病原菌主要栖息于特定自然环境且与人类宿主并无紧密的共生和共进化关系,迄今为止也没有揭示该类真菌存在任何专性感染宿主的分子机器.该类病原真菌致病性的生物学基础是什么?其毒力是如何进化而来的?对这些关键问题的解析可能会帮助我们理解环境病原真菌致病和毒力进化的核心机制,从而为发展新型真菌治疗策略提供理论前提. ...
Games of life and death: antibiotic resistance and production through the lens of evolutionary game theory
1
2014
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Titan cell production enhances the virulence of Cryptococcus neoformans.
1
2012
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
. Cryptococcus neoformans of unusual morphology
1
1973
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Ionizing radiation: how fungi cope, adapt, and exploit with the help of melanin
1
2008
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
The Cryptococcus neoformans titan cell is an inducible and regulated morphotype underlying pathogenesis.
1
2018
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Cryptococcal pathogenic mechanisms: a dangerous trip from the environment to the brain
1
2018
... 新生隐球菌是一种重要侵袭性病原真菌.据统计,2014年全球新发22.3万例新生隐球菌所引发的隐球菌脑膜炎,并导致18.1万人死亡(Rajasingham et al. 2017).该菌生境宽泛,在土壤、鸽粪和桉树等环境中均能检测到其存在(Lin & Heitman 2006),导致其成为全球范围内的重要病原菌.隐球菌可以以干酵母形态或孢子形态,通过人体呼吸吸入的方式进入肺部(Lin & Heitman 2006;May et al. 2016;Esher et al. 2018),并通过血液进行肺外扩散,最终突破血脑屏障,引发高致死率的隐球菌脑膜炎. ...
Dynamic changes in the morphology of Cryptococcus neoformans during murine pulmonary infection.
1
2001
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Same-sex mating and the origin of the Vancouver Island Cryptococcus gattii outbreak.
1
2005
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Elucidating the pathogenesis of spores from the human fungal pathogen Cryptococcus neoformans.
1
2009
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Quorum sensing communication between bacteria and human cells: signals, targets, and functions
1
2014
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Intracellular action of a secreted peptide required for fungal virulence
1
2016
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Titan cells formation in Cryptococcus neoformans is finely tuned by environmental conditions and modulated by positive and negative genetic regulators.
1
2018
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Quorum sensing in the dimorphic fungus Candida albicans is mediated by farnesol.
1
2001
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Cryptococcus neoformans requires the ESCRT protein Vps23 for iron acquisition from heme, for capsule formation, and for virulence
2
2013
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
... ).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
The iron-responsive, GATA-Type transcription factor Cir1 influences mating in Cryptococcus neoformans.
1
2011
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
Profiling a killer, the development of Cryptococcus neoformans.
1
2012
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
Emerging themes in cryptococcal capsule synthesis
1
2011
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
TUP1 disruption in Cryptococcus neoformans uncovers a peptide-mediated density-dependent growth phenomenon that mimics quorum sensing.
1
2007
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Pseudohyphal growth of Cryptococcus neoformans is a reversible dimorphic transition in response to ammonium that requires Amt1 and Amt2 ammonium permeases.
1
2012
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Mating-type locus of Cryptococcus neoformans: a step in the evolution of sex chromosomes.
1
2002
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Morphology and its underlying genetic regulation impact the interaction between Cryptococcus neoformans and its hosts.
1
2015
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Cryptococcus neoformans: morphogenesis, infection, and evolution
1
2009
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
The biology of the Cryptococcus neoformans species complex.
2
2006
... 新生隐球菌是一种重要侵袭性病原真菌.据统计,2014年全球新发22.3万例新生隐球菌所引发的隐球菌脑膜炎,并导致18.1万人死亡(Rajasingham et al. 2017).该菌生境宽泛,在土壤、鸽粪和桉树等环境中均能检测到其存在(Lin & Heitman 2006),导致其成为全球范围内的重要病原菌.隐球菌可以以干酵母形态或孢子形态,通过人体呼吸吸入的方式进入肺部(Lin & Heitman 2006;May et al. 2016;Esher et al. 2018),并通过血液进行肺外扩散,最终突破血脑屏障,引发高致死率的隐球菌脑膜炎. ...
... ),导致其成为全球范围内的重要病原菌.隐球菌可以以干酵母形态或孢子形态,通过人体呼吸吸入的方式进入肺部(Lin & Heitman 2006;May et al. 2016;Esher et al. 2018),并通过血液进行肺外扩散,最终突破血脑屏障,引发高致死率的隐球菌脑膜炎. ...
The heat-shock proteins
1
1988
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
Large Cryptococcus neoformans isolated from brain abscess.
1
1985
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Cryptococcus: from environmental saprophyte to global pathogen
2
2016
... 新生隐球菌是一种重要侵袭性病原真菌.据统计,2014年全球新发22.3万例新生隐球菌所引发的隐球菌脑膜炎,并导致18.1万人死亡(Rajasingham et al. 2017).该菌生境宽泛,在土壤、鸽粪和桉树等环境中均能检测到其存在(Lin & Heitman 2006),导致其成为全球范围内的重要病原菌.隐球菌可以以干酵母形态或孢子形态,通过人体呼吸吸入的方式进入肺部(Lin & Heitman 2006;May et al. 2016;Esher et al. 2018),并通过血液进行肺外扩散,最终突破血脑屏障,引发高致死率的隐球菌脑膜炎. ...
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Quorum sensing in bacteria
1
2001
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Cryptococcus neoformans mates on pigeon guano: implications for the realized ecological niche and globalization
1
2007
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Unisexual and heterosexual meiotic reproduction generate aneuploidy and phenotypic diversity de novo in the yeast Cryptococcus neoformans.
1
2013
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Titan cells confer protection from phagocytosis in Cryptococcus neoformans infections.
1
2012
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
The Cryptococcus neoformans capsule: a sword and a shield.
1
2012
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
Melanin is effective in protecting fast and slow growing fungi from various types of ionizing radiation
1
2017
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
Cryptococcus neoformans: the yeast that likes it hot
2
2006
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
... ).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
Unisexual reproduction enhances fungal competitiveness by promoting habitat exploration via hyphal growth and sporulation
1
2013
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Global burden of disease of HIV-associated cryptococcal meningitis: an updated analysis
1
2017
... 新生隐球菌是一种重要侵袭性病原真菌.据统计,2014年全球新发22.3万例新生隐球菌所引发的隐球菌脑膜炎,并导致18.1万人死亡(Rajasingham et al. 2017).该菌生境宽泛,在土壤、鸽粪和桉树等环境中均能检测到其存在(Lin & Heitman 2006),导致其成为全球范围内的重要病原菌.隐球菌可以以干酵母形态或孢子形态,通过人体呼吸吸入的方式进入肺部(Lin & Heitman 2006;May et al. 2016;Esher et al. 2018),并通过血液进行肺外扩散,最终突破血脑屏障,引发高致死率的隐球菌脑膜炎. ...
Temperature-regulated transcription in the pathogenic fungus Cryptococcus neoformans.
1
2002
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
Unisexual reproduction drives meiotic recombination and phenotypic and karyotypic plasticity in Cryptococcus neoformans.
1
2014
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
The iron- and cAMP-regulated gene SIT1 influences ferrioxamine B utilization, melanization and cell wall structure in Cryptococcus neoformans.
1
2007
... 要成为一个成功的病原菌,环境真菌要克服的一个重要的障碍是宿主的体温环境.在已知的150多万种真菌中,绝大部分的环境真菌只能在25℃-35℃的温度范围内进行生长,仅有少量真菌能够在接近人体体温(37℃)的条件下进行繁殖,因此温度作为一个关键因素决定了环境真菌的侵染能力(Perfect 2006).新生隐球菌可以在37℃-40℃的温度条件下进行快速生长,其高温耐受能力涉及了多样的代谢调控通路,暗示着隐球菌对高温耐受性的调控可能受多种因素的影响(Perfect 2006),其中热休克蛋白Hsp(heat shock protein)是一类十分关键的蛋白.Hsp是一类保守的分子伴侣蛋白,它参与调控的代谢通路多样,对微生物对环境压力和高温的耐受性十分重要(Lindquist & Craig 1988).对隐球菌感染过程中的基因表达分析表明,Hsp12、Hsp60、Hsp70和Hsp90等热休克蛋白对隐球菌侵染宿主发挥重要作用(Steen et al. 2002).新生隐球菌除了可以通过典型的毒力因子来适应复杂的环境,还拥有比较独特的代谢途径来抢夺一些生存必需的“资源”,维系其在特定生境/宿主微环境中的生存优势.铁作为必需元素,参与多样的生物学过程.对于新生隐球菌而言,铁离子可以参与荚膜与细胞壁的合成以及有性生殖过程(Tangen et al. 2007;Jung & Kronstad 2011;Hu et al. 2013).酿酒酵母中的铁摄入过程,需要先把铁离子还原成亚铁离子摄入到细胞内,然后再氧化成铁离子加以利用.在隐球菌中,存在和酿酒酵母关键铁摄入相关分子机器(高亲和力铁离子转运复合物,铁载体转运蛋白和血红素合成/转运系统)同源的编码基因,但在一些组分的分子功能上与酿酒酵母、白念珠菌和烟曲霉存在差异(Bairwa et al. 2017).这说明不同的真菌可能为了适应不同的生境环境而导致了铁摄入系统的趋异进化.致病真菌在感染宿主过程中,铁离子的来源主要是血红素和血红蛋白(Bairwa et al. 2017).隐球菌可以通过内体蛋白分选转运复合物(endosomal sorting complex required for transport,ESCRT)蛋白Vps23从血红素中摄取铁离子,并加以利用(Hu et al. 2013).这说明隐球菌可以通过自身较为独特的铁摄入系统,从宿主环境中获取生长所必需的铁资源. ...
. Cryptococcus neoformans sexual reproduction is controlled by a quorum sensing peptide
1
2018
... 微生物可通过细胞-细胞通讯(cell-cell communication)策略应对来自于生境和宿主的压力(Conlin et al. 2014).其中研究最为透彻的一类微生物细胞通讯因子是群体感应效应因子(quorum-sensing molecules).该类因子可响应细胞密度对相关基因的表达进行调控(Bassler 1999;Holm & Vikström 2014).微生物的群体感应效应现象首先发现于肺炎双球菌Streptococcus pneumoniae的感受态形成过程以及弧菌属的生物发光过程(Bassler & Losick 2006).随后的研究发现,许多细菌都存在群体感应效应,它与细菌的毒力调控、生物膜的形成和抗生素的分泌都有着密切的关系(Miller & Bassler 2001).在真菌中,首个被发现的群体感应效应分子是人类共生病原真菌白念珠菌中的法尼醇(Hornby et al. 2001).法尼醇可以抑制白色念珠菌生物被膜的产生以及酵母-菌丝的双态性转换,并且可以提高白念珠菌的抗氧化能力和调节白念珠菌的体内药物代谢通路(Albuquerque & Casadevall 2012).而白念珠菌的另一个群体感应效应分子酪醇(Tyrosol),则展现了与法尼醇相反的效果,可以促进白念珠菌生物被膜的形成以及酵母-菌丝形态的转换(Albuquerque & Casadevall 2012).在新生隐球菌中,首个被发现的群体感应效应分子是由11个氨基酸组成的多肽Qsp1(Lee et al. 2007).有研究发现群体感应效应分子Qsp1参与了隐球菌毒力调控的过程(Homer et al. 2016).本课题组最近发现,Qsp1对于新生隐球菌的有性生殖过程至关重要.高浓度的Qsp1可以作为一种信号分子诱导有性生殖的发生,并且这种诱导行为依赖于含有锌指结构域的调控蛋白Cqs2(Tian et al. 2018).关于环境病原真菌的群体感应效应,还有许多疑问需要解决:群体感应效应对于环境病原真菌是否还有其他未知的重要作用?群体感应效应到底通过哪些细胞响应机制提高了环境病原真菌对外界环境的适应力?这些问题还有待于进一步的研究. ...
Cryptococcus neoformans can form titan-like cells in vitro in response to multiple signals.
1
2018
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Mechanisms of unisexual mating in Cryptococcus neoformans.
1
2011
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Melanin, melanin “ghosts”, and melanin composition in Cryptococcus neoformans.
1
1996
... 隐球菌的感染与其关键毒力特征密不可分,其中重要的毒力因子包括胞外多糖荚膜(capsule)和黑色素(melanin)的形成以及耐受宿主体温(Kumar et al. 2011;Kozubowski & Heitman 2012).越来越多的证据表明,隐球菌进化出毒力性征并不是特异性应用于其宿主感染而是用于抵抗自然生境来源的生物/非生物压力(biotic/abiotic stress).例如,多糖荚膜对于隐球菌有效抵抗宿主巨噬细胞的吞噬十分重要.而在自然生境中,多糖荚膜的形成作为关键的环境适应性策略参与了对干燥压力的耐受且抑制了隐球菌的天然捕食者阿米巴变形虫的吞食(O’Meara & Alspaugh 2012).作为新生隐球菌重要的毒力因子之一,黑色素可协助隐球菌抵抗免疫细胞产生的氧化自由基的杀伤(Wang et al. 1996).黑色素存在于很多环境真菌,推测其可协助真菌抵抗高剂量的辐射(Pacelli et al. 2017).如在废弃的切尔诺贝利核电站以及核反应的冷却池中皆发现了可以产生黑色素的真菌物种,说明产生黑色素来抵御严苛物化压力很可能是真菌广泛采用的一种较为保守的适应策略,并不是专性用于进行宿主寄生(Dadachova & Casadevall 2008). ...
The human fungal pathogen Cryptococcus can complete its sexual cycle during a pathogenic association with plants.
1
2007
... 新生隐球菌具有两种交配型(交配型a和交配型α)(Lengeler et al. 2002).两种交配型在环境中皆主要以单倍体酵母细胞的形态存在,其增殖方式主要为无性出芽增殖(Sun et al. 2014).然而在一些特定的环境因子刺激下,隐球菌可以进行有性生殖,包括a-α异性生殖与α同性生殖(Nielsen et al. 2007;Xue et al. 2007).由于自然界中超过99%的菌株为α交配型,因而推测α同性生殖可能是隐球菌主要的有性生殖方式.隐球菌的α同性生殖和a-α异性生殖的形态发育过程非常类似.异性生殖的发生主要依赖于α细胞和a细胞的细胞-细胞融合,形成二倍体细胞,然后进一步发育形成菌丝,产生担子,再经过减数分裂,形成有性孢子,完成异性生殖发育周期.相比于a-α异性生殖,α同性生殖并不依靠细胞融合而是通过核内复制(endoreplication)完成染色体倍化阶段,二倍体菌丝进而形成担子,借助减数分裂过程产生单倍体性孢子(Wang & Lin 2011).由于有性生殖的核心生物学过程——减数分裂遗传重组可导致子裔遗传信息的多样性,故有性生殖被认为是隐球菌加速基因组微进化并加速高毒菌株和耐药菌株产生的一个重要策略.Heitman等人发现,有性生殖作为一个重要的微进化驱动手段导致新生隐球菌的姊妹种格特隐球菌高毒菌株的产生,并造成了加拿大温哥华岛的格特隐球菌爆发性感染(Fraser et al. 2005).此外,Ni et al.(2013)揭示,α同性生殖能够导致染色体倍性的多样性,引发氟康唑耐药菌株快速产生.除了有性生殖以外,隐球菌还可以利用其他手段加速其基因组微进化过程.Boyce et al.(2017)对隐球菌错配修复(mismatch repair,MMR)通路相关基因的突变体的研究发现,错配修复通路相关基因的突变能够形成超级突变体(mutator),该类突变体的基因突变率大幅度上升,极大加快隐球菌微进化的速率,并能够迅速导致菌株耐药.Billmyre et al.(2017)的研究发现在格特隐球菌中MMR通路相关基因MSH2基因功能的丧失,可以引起哥特隐球菌的超级突变(hypermutation).这种超级突变并不会直接影响哥特隐球菌的毒力,但是有助于哥特隐球菌在压力环境下的生存.这说明隐球菌在基因组上的微进化能够帮助隐球菌更好地适应环境,并且有可能在隐球菌病治疗方面带来更大的挑战. ...
Titan cells in Cryptococcus neoformans: cells with a giant impact.
1
2013
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...
Hydroxyurea enhances post-fusion hyphal extension during sexual development in C. neoformans var. grubii.
1
2012
... 作为典型的人类环境病原真菌,新生隐球菌存在着包含酵母、巨细胞、性孢子、菌丝以及假菌丝在内的多种形态.细胞形态的可塑性可以协助新生隐球菌更好地适应多变的外界环境和宿主微环境(Lin 2009).隐球菌的酵母形态为隐球菌最常见的细胞形态,被认为是隐球菌进行宿主侵染的主要形态(May et al. 2016).当隐球菌酵母细胞进入肺部以后,一部分细胞膨大形成巨细胞形态,该细胞形态也被称为泰坦细胞形态(titan cell morphology).为了与普通酵母形态(5-10μm)相区别,泰坦细胞被定义为细胞体直径大于15μm,或是细胞总体直径(诱导了荚膜产生后)大于30μm的一类细胞(Trevijano-Contador et al. 2018).研究人员在被隐球菌感染的宿主的脑部和肺部的组织中都观察到了泰坦细胞的存在(Cruickshank et al. 1973;Love et al. 1985;Feldmesser et al. 2001).后续的研究发现,在小鼠肺部感染过程中,泰坦细胞不但自身很难被吞噬细胞吞噬,而且也能保护正常大小的隐球菌细胞逃离吞噬过程(Crabtree et al. 2012;Okagaki & Nielsen 2012;Zaragoza & Nielsen 2013).由于缺乏合适的体外诱导条件,关于泰坦细胞的研究长期局限于体内培养.但是,体内的环境十分复杂,干扰因素较多,为泰坦细胞的研究带来很多阻碍.最近,Elizabeth等人的工作报道了营养匮乏等条件可以诱导体外泰坦细胞的形成.该工作为泰坦细胞的体外培养奠定了基础(Dambuza et al. 2018;Hommel et al. 2018;Trevijano-Contador et al. 2018).有性孢子是隐球菌有性生殖的产物.由于其体积小(1.8-3.0μm)、抗逆性强和易于散播,有性孢子是新生隐球菌重要的感染繁殖体.根据之前研究的报道,隐球菌的孢子形态比酵母形态更加抗逆,且在早期感染过程中可能相较于酵母形态更具优势(Botts et al. 2009;Giles et al. 2009).与酵母形态和孢子相比,隐球菌的假菌丝极少在临床病例中观察到,小鼠感染实验表明,假菌丝细胞并不具备致病能力(Lin et al. 2015).Lee et al.(2012)发现以铵盐为单一氮源的培养基能诱导假菌丝的形成,以及与阿米巴变形虫的共培养也可诱导假菌丝产生,说明假菌丝形态可能有助于隐球菌抵抗自然界中捕食者的吞噬或抵抗特定的逆境压力.与假菌丝形态相同,菌丝形态也被认为并不参与隐球菌的感染.尽管与感染无关,菌丝形成作为隐球菌的一个重要的性发育阶段,参与隐球菌有性生殖过程(Zulkifli et al. 2012).同时,隐球菌的菌丝形态也可以帮助隐球菌菌落进行有效扩张并获取营养(Phadke et al. 2013).以上研究结果表明,隐球菌细胞形态的多样性可以帮助隐球菌适应外界和宿主环境,抵抗捕食者的侵袭以及协助隐球菌菌群扩张.事实上,这种通过细胞的形态转换以适应不同环境的生存方式,在许多环境病原真菌中都存在,且与病原菌感染过程高度相关.这说明,在环境病原真菌中,通过不同细胞形态的转换来灵活地适应多变的生境/宿主环境,很可能是环境病原真菌广泛采用的一种生存策略. ...